核心结论速览
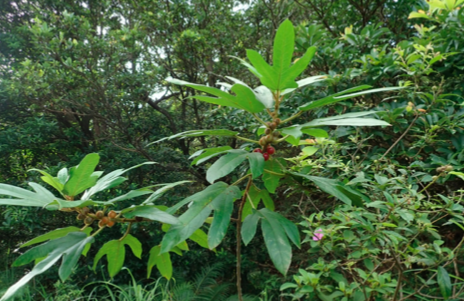
2025 年 4 月 23 日,Frontiers in Genetics 发表了五指毛桃(粗叶榕,Ficus hirta Vahl)首个完整线粒体基因组研究。研究者用 Nanopore 长读长与 Illumina 短读长混合组装,得到长度 486,226 bp、GC 含量 45.21% 的单一环状线粒体基因组,注释出 31 个蛋白编码基因、19 个 tRNA 基因和 3 个 rRNA 基因。线粒体与叶绿体之间发现 15 段同源序列,合计 4,979 bp,占线粒体基因组的 1.02%。基于 23 个保守线粒体基因的系统发育分析,将五指毛桃置于蔷薇目桑科,与川桑(Morus notabilis)亲缘最近。RNA 编辑预测得到 419 个 C-to-U 位点。这是一项基因组资源型研究,不涉及药效与临床结论。
文献信息
- 论文题目
- Complete mitochondrial genome of Ficus hirta and its comparative analysis
- 作者与单位
- Wangdong Deng(深圳市龙岗区中心医院泌尿外科;广州中医药大学深圳临床医学院;汕头大学医学院);Xinyi Cai(通讯作者,汕头大学医学院病理学系)
- 期刊与卷期
- Frontiers in Genetics,2025 年第 16 卷,文章编号 1530105(ISSN 1664-8021)
- 时间线
- 2024 年 11 月 18 日收稿,2025 年 3 月 17 日接收,2025 年 4 月 23 日发表
- DOI
- 10.3389/fgene.2025.1530105
- 开放获取
- CC BY 4.0,另可在 PubMed Central(PMC12055533)阅读全文
- 数据提交
- NCBI BankIt 提交号:线粒体基因组 2944861,叶绿体基因组 2945015(提交号不等同于最终 GenBank 登录号)
研究背景:为什么要解析五指毛桃的线粒体基因组
五指毛桃在中国又称粗叶榕,是桑科榕属的雌雄异株植物。据此前发表的叶绿体基因组研究介绍,其干燥根(Radix Fici Hirtae)是岭南地区长期使用的传统草药。论文引言援引已有研究指出,其抗炎与抗氧化作用与多种活性成分有关,例如 Cheng 等人 2017 年报道了根部酚类成分的抗炎活性,Chen 等人 2020 年报道了抗氧化与抗真菌活性并用 HPLC-MS 分析了主要成分。
生态层面,论文指出五指毛桃依赖专一性榕小蜂传粉,鸟类和蝙蝠参与种子传播。由于市场需求带来的过度采挖,野生资源明显减少,但 Lu 等人 2022 年基于微卫星位点的研究显示,其遗传多样性较高、种群分化较低,这意味着保护与可持续利用仍有遗传基础。
在这项研究之前,五指毛桃已有叶绿体基因组报道:Liu 等人 2019 年测得其叶绿体基因组全长 160,374 bp、GC 含量 36.0%,共注释 130 个基因(85 个蛋白编码基因、37 个 tRNA 基因、8 个 rRNA 基因),序列登录号为 MN364706,并显示其与无花果(Ficus carica)亲缘较近。线粒体基因组则是空白。
线粒体基因组之所以值得单独解析,原因在于植物线粒体 DNA 有鲜明特点。Wynn 与 Christensen 2019 年在 G3 上指出,植物线粒体基因组体积相对于编码容量偏大,基因序列突变率很低,却有很高的重排率,物种之间几乎没有共线性保守,并含有丰富的非串联重复序列。这意味着,只有把一个物种自己的线粒体基因组组装出来,才能知道它的结构、重复序列与外源序列整合情况。
研究设计与技术路线
样本为在岭南地区多个地点采集的五指毛桃新鲜叶片,约 100 mg 组织用 CTAB 法提取总 DNA,经 NanoDrop 与琼脂糖凝胶电泳评估质量。测序平台为 Illumina NovaSeq(150 bp 双端,约 5 Gb)与 Nanopore PromethION(约 10 Gb 长读长)。
组装流程分为几步。先用 Flye(v2.9)完成长读长初步组装,再用 BLASTn 以拟南芥线粒体保守基因为探针筛选线粒体候选序列,并在 Bandage(v0.8.1)中人工挑选。随后分别用 BWA-MEM 与 minimap2 把短读长、长读长回比到参考序列并提取线粒体相关读段,再用 Unicycler(v0.4.8)混合组装得到环状线粒体基因组,最后用 Pilon(v1.23)以短读长抛光。长读长负责跨越重复区、确定整体结构,短读长负责碱基层面的纠错,这是目前植物线粒体基因组组装的常见思路。
注释使用 GeSeq(v1.85),以拟南芥和鹅掌楸线粒体基因组为参考,tRNA 用 tRNAscan-SE(v2.0)识别,rRNA 用 BLASTN 注释,并用 Apollo 人工校正,基因组图谱由 OGDRAW 绘制。密码子偏好用 MEGA 计算 RSCU;SSR 用 MISA-web,散在重复用 REPuter,串联重复用 Tandem Repeats Finder;叶绿体基因组用 GetOrganelle 组装;系统发育用 MAFFT 比对、IQ-TREE 构建最大似然树;RNA 编辑用 PREP-Mt 预测;共线性用 BLASTN 与 MCScanX 分析。
关键数据一览
| 指标 | 数值 | 说明 |
|---|---|---|
| 基因组构型 | 单一环状分子 | 组装图谱层面的代表性结构 |
| 全长 | 486,226 bp | 约为已报道叶绿体基因组(160,374 bp)的 3 倍 |
| GC 含量 | 45.21% | 叶绿体基因组为 36.0%(Liu 等,2019) |
| 蛋白编码基因 | 31 个 | 24 个核心基因 + 7 个非核心基因 |
| tRNA / rRNA 基因 | 19 个 / 3 个 | 含多拷贝变体 |
| 简单重复序列(SSR) | 153 个 | 单核苷酸与二核苷酸合计占 58.82%;未检出六核苷酸 SSR |
| 串联重复 | 15 个 | 长度 15–48 bp,匹配分数大于 81% |
| 散在重复(大于 30 bp) | 417 条 | 回文 205、正向 211、互补 1、反向 0;最长回文 12,060 bp,最长正向 521 bp |
| 线粒体—叶绿体同源片段 | 15 段 | 合计 4,979 bp,占线粒体基因组 1.02%;最长 MTPT7 为 1,266 bp |
| 同源片段内完整基因 | 3 个 tRNA 基因 | trnD-GUC、trnI-CAU、trnM-CAU |
| 系统发育数据集 | 23 个基因 / 31 个物种 / 5 个科 | 豆科 2 个物种作外类群 |
| 预测 RNA 编辑位点 | 419 个 | 全部为 C-to-U;阈值 0.9;nad4 最多(47 个),nad7 次之(36 个) |
| 密码子偏好示例 | Ala 的 GCU:RSCU 1.63;Pro 的 CCU:RSCU 1.58 | Phe 的最大 RSCU 低于 1.2,偏好较弱 |
结果解读:基因组结构与基因内容
31 个蛋白编码基因中,24 个为核心基因,包括 5 个 ATP 合酶基因(atp1、atp4、atp6、atp8、atp9)、9 个 NADH 脱氢酶基因(nad1、nad2、nad3、nad4、nad4L、nad5、nad6、nad7、nad9)、4 个细胞色素 c 合成相关基因(ccmB、ccmC、ccmFC、ccmFN)、3 个细胞色素 c 氧化酶基因(cox1、cox2、cox3),以及 mttB、matR 与 cob 各 1 个。7 个非核心基因为 rpl16、rps4、rps7、rps12、rps13、sdh3 与 sdh4。核心与非核心基因加总为 31 个,与论文摘要一致。
与拟南芥和鹅掌楸的线粒体基因组比对表明,核心基因集合完整保留,且没有检出五指毛桃特有的新蛋白编码基因。这说明五指毛桃线粒体的基因内容属于被子植物的典型配置,其特殊性主要体现在非编码区的结构与序列排布,而不是基因数量。
密码子使用偏好:A/T 结尾更常见
RSCU 大于 1 表示该密码子被优先使用。除起始密码子 AUG 与色氨酸 UGG 的 RSCU 恒为 1 外,其余氨基酸普遍存在偏好:丙氨酸偏好 GCU(RSCU 1.63,论文报告的最高值),脯氨酸偏好 CCU(1.58),苯丙氨酸最大 RSCU 不足 1.2,偏好较弱。作者在讨论中指出,第三位偏好 A/T 结尾是植物线粒体基因组的常见模式,并认为突变压力与自然选择共同塑造这一格局。需要说明的是,密码子偏好对翻译效率的影响,论文引用的是人类 mRNA 稳定性研究,不能直接等同于五指毛桃线粒体内的实测结论。
重复序列与基因组重排:12,060 bp 的回文重复
重复序列是理解植物线粒体基因组“易重排”特点的关键。论文共检出 153 个 SSR,其中单核苷酸与二核苷酸占 58.82%,单核苷酸 SSR 中腺嘌呤重复占 53.57%。另有 15 个串联重复和 417 条长于 30 bp 的散在重复,主要分布在基因间区。最长的回文重复长 12,060 bp,在 486,226 bp 的基因组中占比不小。
共线性分析对比了五指毛桃与另外 5 个蔷薇目物种(具体物种见原文图 8),发现共线区块短且排列顺序不一致,并有五指毛桃独有、与其他物种无同源性的区域,作者据此认为五指毛桃线粒体基因组与近缘物种相比经历了广泛重排。这与 Wynn 与 Christensen 总结的规律一致:植物线粒体基因序列保守,而结构高度可变,大重复序列通过重组导致基因组异构化。至于具体哪些重复介导了五指毛桃的重组,论文只作了推测,尚无实验验证。
叶绿体与线粒体之间的序列转移:15 段同源片段
用 BLASTN(比对长度不少于 100 bp,一致性高于 90%)比较线粒体与叶绿体基因组,得到 15 段同源序列,合计 4,979 bp,占线粒体基因组的 1.02%,最长的 MTPT7 为 1,266 bp,其中含有 3 个完整的 tRNA 基因:trnD-GUC、trnI-CAU 和 trnM-CAU。方法部分还说明,rrn16S、rrn23S、rrn4.5S 与 rrn5S 等高度保守的核糖体 RNA 基因区域在分析中被屏蔽或剔除,以减少保守序列带来的偏差。
讨论部分援引 Cui 等人 2021 年的西瓜与甜瓜研究,称叶绿体来源序列在这两种植物线粒体基因组中分别占 7.6% 和 2.73%。以此对照,五指毛桃的 1.02% 属于较低水平,作者将其归为“小片段整合”。这里有两点值得读者留意。其一,原文摘要把这类基因交换称为 intercellular,但从正文语境看,论述的是同一细胞内叶绿体与线粒体两个细胞器基因组之间的转移,应理解为胞内(intracellular)或细胞器间转移。其二,同源性只能证明两个基因组共享相似序列,并不能单独证明转移方向;叶绿体向线粒体转移是植物中被广泛描述的主流方向,但具体到五指毛桃的 15 个片段,论文没有提供独立的方向性检验。
系统发育定位:与川桑亲缘最近
系统发育树基于 23 个在各物种中共有的线粒体蛋白编码基因构建(atp1、atp4、atp6、atp8、atp9、ccmB、ccmC、ccmFC、ccmFN、cob、cox1、cox2、cox3、matR、mttB、nad2、nad3、nad4、nad4L、nad5、nad6、nad7、nad9),使用 MAFFT 比对与 IQ-TREE 最大似然法。数据集包含 31 个物种,分属 5 个科:蔷薇科 23 种、桑科 2 种(五指毛桃与川桑)、大麻科 2 种、鼠李科 2 种,以及作外类群的豆科 2 种(大豆与决明)。五个科中,桑科、大麻科、鼠李科与蔷薇科同属蔷薇目,豆科则属于豆目。
结果显示五指毛桃与川桑聚为一支,拓扑结构与 APG IV 分类(Chase 等,2016)一致。需要提醒的是,数据集中桑科只有 2 个代表物种,榕属内部只有五指毛桃一个物种,因此这棵树能确认的是“五指毛桃位于桑科,且与川桑最近”,并不能回答榕属内部的亲缘关系。后者在叶绿体研究中已有线索:Liu 等人 2019 年显示五指毛桃与无花果较近。
RNA 编辑预测:419 个位点,但尚待实验验证
RNA 编辑是植物线粒体基因表达的重要环节。Ichinose 与 Sugita 2016 年的综述指出,胞嘧啶到尿嘧啶(C-to-U)的转换在植物线粒体与叶绿体中普遍存在,多数编码区内的编辑使被编辑位点所在的氨基酸更接近进化上保守的序列,可被视为转录后水平的校正机制。
本研究用 PREP-Mt(v0.9,阈值 0.9)对 31 个蛋白编码基因预测,共得到 419 个潜在编辑位点,全部为 C-to-U。nad4 基因位点最多(47 个),其次为 nad7(36 个)。有 3 个编辑与翻译起始或终止相关:nad1 的起始密码子 ACG 被编辑为 AUG,atp9 的终止密码子 CAA 被编辑为 UAA,ccmFC 的终止密码子 CGA 被编辑为 UGA。
背景对照方面,PREP-Mt 的开发者 Mower 在 2005 年报告,被子植物 30 至 40 个线粒体蛋白编码基因中大约有 400 个编辑位点(均为 C-to-U),五指毛桃的 419 个处于同一数量级。该工具在其测试集上的准确率为 97.9%,灵敏度为 82.2%,特异性为 98.9%,但这些数字描述的是工具在已知数据上的表现,不等于五指毛桃每个位点都真实存在。作者本人也在讨论中表示,预测结果需要 RNA-seq 数据进一步验证。
对医药与药材研究的意义与边界
从医学与药学视角看,这篇论文提供的是基础资源,而不是药效证据。可以较有把握地说的是:它首次给出了五指毛桃线粒体基因组的完整序列与注释,补齐了此前只有叶绿体基因组的空白;它报告了线粒体与叶绿体之间的序列整合,以及重复序列与结构重排的特征;它把五指毛桃放进了更完整的蔷薇目线粒体比较框架中。
可以作为后续研究方向的推论(并非该论文的结论)包括:细胞器基因组数据可能为药材基原鉴定与分子标记开发提供新材料;结合已有的高遗传多样性、低种群分化结果,可为野生资源保护与可持续利用提供遗传背景;线粒体基因组结构的种内变异是否存在,需要更多个体与居群的数据来回答。
本文为科研论文解读,不构成诊疗、用药或保健建议。论文未涉及五指毛桃的药效、安全性、有效成分含量或临床数据,请勿据此判断疗效。如需使用五指毛桃或相关产品,请咨询执业医师或药师。
局限性与读者需要注意的问题
第一,RNA 编辑位点为软件预测,缺乏转录组验证。第二,线粒体与叶绿体同源片段的方向性未经独立检验。第三,论文以单一环状分子呈现线粒体基因组,而 Kozik 等人 2019 年在 PLoS Genetics 上的研究显示,植物线粒体 DNA 实际是多种物理形式与序列排布的复杂混合体,“单一环”更像是便于描述的主图谱。第四,样本采自岭南多个地点,论文未讨论个体或居群间的线粒体差异。第五,方法部分在长读长比对处文字写作 Nanopore 预设(-ax map-ont),而所列示例命令为 -ax map-pb,复现者应以作者提供的补充数据为准。第六,数据以 NCBI BankIt 提交号给出,检索时应留意最终的 GenBank 登录号。
常见问题(FAQ)
五指毛桃的线粒体基因组有多大,是什么结构?
根据 Frontiers in Genetics 2025 年论文,五指毛桃(Ficus hirta)线粒体基因组组装为单一环状分子,全长 486,226 bp,GC 含量 45.21%。这一长度约为此前报道的五指毛桃叶绿体基因组(160,374 bp,GC 含量 36.0%)的 3 倍。需要注意,植物线粒体 DNA 在细胞内往往以多种构型并存,单一环状图谱是组装层面的代表性模型。
五指毛桃线粒体基因组含有多少个基因?
论文注释出 31 个蛋白编码基因(24 个核心基因加 7 个非核心基因)、19 个 tRNA 基因和 3 个 rRNA 基因,其中部分 tRNA 与 rRNA 存在多拷贝。与拟南芥和鹅掌楸线粒体基因组比对后,研究者未发现五指毛桃特有的新蛋白编码基因。
线粒体与叶绿体之间的基因转移发现了什么?
研究在线粒体与叶绿体基因组之间鉴定出 15 段同源序列,总长 4,979 bp,占线粒体基因组的 1.02%,最长片段 MTPT7 为 1,266 bp。这些片段中包含 3 个完整的 tRNA 基因:trnD-GUC、trnI-CAU 与 trnM-CAU。同源性本身只能说明序列相似,转移方向需要结合其他证据判断。
五指毛桃与哪种植物亲缘关系最近?
研究基于 23 个保守线粒体蛋白编码基因,对 5 个科共 31 个物种构建最大似然系统发育树,结果显示五指毛桃位于蔷薇目桑科,与川桑(Morus notabilis)亲缘关系最近,拓扑结构与被子植物系统发育组分类(APG IV)一致。豆科的两个物种被用作外类群。
论文中的 419 个 RNA 编辑位点是实验验证的吗?
不是。419 个 C-to-U 编辑位点由 PREP-Mt(v0.9)软件在阈值 0.9 下预测得到,属于计算预测结果,作者在讨论中也指出后续应利用 RNA-seq 数据进行实验验证。预测显示 nad4 基因位点最多(47 个),其次为 nad7(36 个),另有 3 个与翻译起始或终止相关的编辑事件。
这项研究能证明五指毛桃的药效吗?
不能。这是一项基因组学描述性研究,没有涉及药效、毒理、有效成分含量或任何临床数据,不能作为用药或保健品使用的依据。它的价值在于为五指毛桃提供细胞器基因组资源,可能服务于后续的物种鉴定、遗传多样性评估和资源保护研究。
为什么植物线粒体基因组很大却基因很少,而且结构容易重排?
已有综述指出,植物线粒体基因组体积相对于编码容量偏大,含有大量非编码序列和重复序列,基因序列的突变率很低,但重排率很高,不同物种之间几乎没有共线性保守。重复序列介导的同源重组被认为是重要原因。五指毛桃的研究中检出 417 条散在重复,最长回文重复达 12,060 bp,与这一规律相符。
这篇论文有哪些局限需要注意?
主要局限包括:RNA 编辑为软件预测而非实验验证;线粒体与叶绿体同源片段的转移方向未经独立验证;以单一环状分子呈现的结构未讨论多构型并存的可能;样本为 岭南地区多个地点采集的叶片,个体与居群层面差异未展开;数据以 NCBI BankIt 提交号形式给出,读者检索时需关注最终的 GenBank 登录号。
如何获取并引用这篇论文?
论文为开放获取(CC BY 4.0),DOI 为 10.3389/fgene.2025.1530105,可在 Frontiers 官网和 PubMed Central(PMC12055533)免费阅读。推荐引用格式:Deng W, Cai X. Complete mitochondrial genome of Ficus hirta and its comparative analysis. Front Genet. 2025;16:1530105.
参考文献与数据来源
本文所有基因组数值均取自原论文正文,并与 Frontiers 官方页面和 PubMed Central 收录版本对照;背景信息引自下列同行评审文献。
- Deng W, Cai X. Complete mitochondrial genome of Ficus hirta and its comparative analysis. Front Genet. 2025;16:1530105. doi:10.3389/fgene.2025.1530105. PMC12055533.
- Liu Y, Chen W, Li F, Li C, Xie X, Chao Z, Tian E. The complete chloroplast genome sequence of Ficus hirta (Moraceae). Mitochondrial DNA Part B. 2019;4(2):4041–4042. doi:10.1080/23802359.2019.1689867. PMID 33366308; PMC7707796.
- Mower JP. PREP-Mt: predictive RNA editor for plant mitochondrial genes. BMC Bioinformatics. 2005;6:96. doi:10.1186/1471-2105-6-96. PMID 15826309.
- Ichinose M, Sugita M. RNA editing and its molecular mechanism in plant organelles. Genes (Basel). 2017;8(1):5(2016 年 12 月 23 日在线发表). doi:10.3390/genes8010005. PMC5295000.
- Chase MW, Christenhusz MJM, Fay MF, et al.; The Angiosperm Phylogeny Group. An update of the Angiosperm Phylogeny Group classification for the orders and families of flowering plants: APG IV. Bot J Linn Soc. 2016;181(1):1–20. doi:10.1111/boj.12385.
- Wynn EL, Christensen AC. Repeats of unusual size in plant mitochondrial genomes: identification, incidence and evolution. G3 (Bethesda). 2019;9(2):549–559. doi:10.1534/g3.118.200948. PMC6385970.
- Gualberto JM, Newton KJ. Plant mitochondrial genomes: dynamics and mechanisms of mutation. Annu Rev Plant Biol. 2017;68:225–252.
- Kozik A, et al. The alternative reality of plant mitochondrial DNA: one ring does not rule them all. PLoS Genet. 2019. PMC6742443.
- Cheng J, Yi X, Wang Y, Huang X, He X. Phenolics from the roots of hairy fig (Ficus hirta Vahl.) exert prominent anti-inflammatory activity. J Funct Foods. 2017;31:79–88. doi:10.1016/j.jff.2017.01.035(经原论文引用)。
- Chen C, Peng X, Chen J, Wan C. Antioxidant, antifungal activities of ethnobotanical Ficus hirta Vahl. and analysis of main constituents by HPLC-MS. Biomedicines. 2020;8(1):15. doi:10.3390/biomedicines8010015(经原论文引用)。
- Lu Y, Chen J, Chen B, et al. High genetic diversity and low population differentiation of a medical plant Ficus hirta Vahl., uncovered by microsatellite loci: implications for conservation and breeding. BMC Plant Biol. 2022;22(1):334. doi:10.1186/s12870-022-03734-2(经原论文引用)。
- Cui H, Ding Z, Zhu Q, Wu Y, Qiu B, Gao P. Comparative analysis of nuclear, chloroplast, and mitochondrial genomes of watermelon and melon provides evidence of gene transfer. Sci Rep. 2021;11:1595. doi:10.1038/s41598-020-80149-9(经原论文引用)。
如何引用本文
孟尧. 五指毛桃线粒体基因组首次完整解析:Frontiers in Genetics 2025 论文深度解读[EB/OL]. 肽度 TIMEDOO, 2026-11-14. https://www.timedoo.com/ficus-hirta-mitochondrial-genome/

评论 (0)