


细胞膜脂质的精准运输与分布是维持神经元健康的关键。近日,耶鲁大学医学院(Yale School of Medicine)的联合研究团队在《细胞》(Cell)和《分子细胞》(Molecular Cell)杂志连续发表两篇重磅论文,首次在原子分辨率水平上解析了 VPS13 蛋白家族成员的完整分子结构,揭示了这类桥状蛋白在细胞内“批量”传输脂质及自我调节的全新机制。该发现为理解舞蹈病-棘红细胞增多症(Chorea-acanthocytosis)和帕金森病(Parkinson's disease)等神经退行性疾病的病理机制提供了重要理论依据。
这两项研究由耶鲁大学细胞生物学系 David W. Wallace 讲席教授 Karin Reinisch 博士实验室与神经科学 John Klingenstein 讲席教授 Pietro De Camilli 博士实验室长期合作完成。瑞士弗里堡大学 Stefano Vanni 教授亦参与了相关研究。
打破传统模式:脂质批量运输的“桥梁模型”
细胞膜及细胞器膜主要由脂质分子构成,大部分脂质在内质网(ER)中合成。传统观点认为,脂质从内质网向其他细胞器的运输主要通过“囊泡(Vesicles)包裹”或“脂质转移蛋白单体穿梭”来完成。然而,近十年来 Reinisch 与 De Camilli 团队的研究表明,VPS13 蛋白家族能够形成一种棒状的通道结构,直接连接内质网与细胞器膜,实现脂质分子的批量(Bulk)连续运输。
发表在《Cell》上的研究聚焦于 VPS13A 蛋白。VPS13A 的基因突变会导致舞蹈病-棘红细胞增多症(现已更名为 VPS13A 疾病),患者表现出不自主运动及红细胞形态异常。研究人员利用单颗粒冷冻电镜(Cryo-EM)技术,成功捕获了处于膜结合状态下的 VPS13A 原子结构。
研究发现,细胞膜由双层脂质构成,VPS13A 通过锚定蛋白 XK 结合在其中一层脂质膜上。当 VPS13A 将脂质输送到该层膜时,XK 蛋白负责将脂质均匀分配至双层膜的两侧。Reinisch 教授解释道,这种双层平衡至关重要,如果仅向单层膜输送脂质,会导致膜结构失衡。巧合的是,XK 蛋白的突变同样会导致一种临床表现极为相似的神经系统疾病——麦克劳德综合征(McLeod syndrome)。这一发现首次阐明了脂质批量输送并整合入膜的全过程。
构象开关:皇冠状结构调控蛋白活性与膜修复
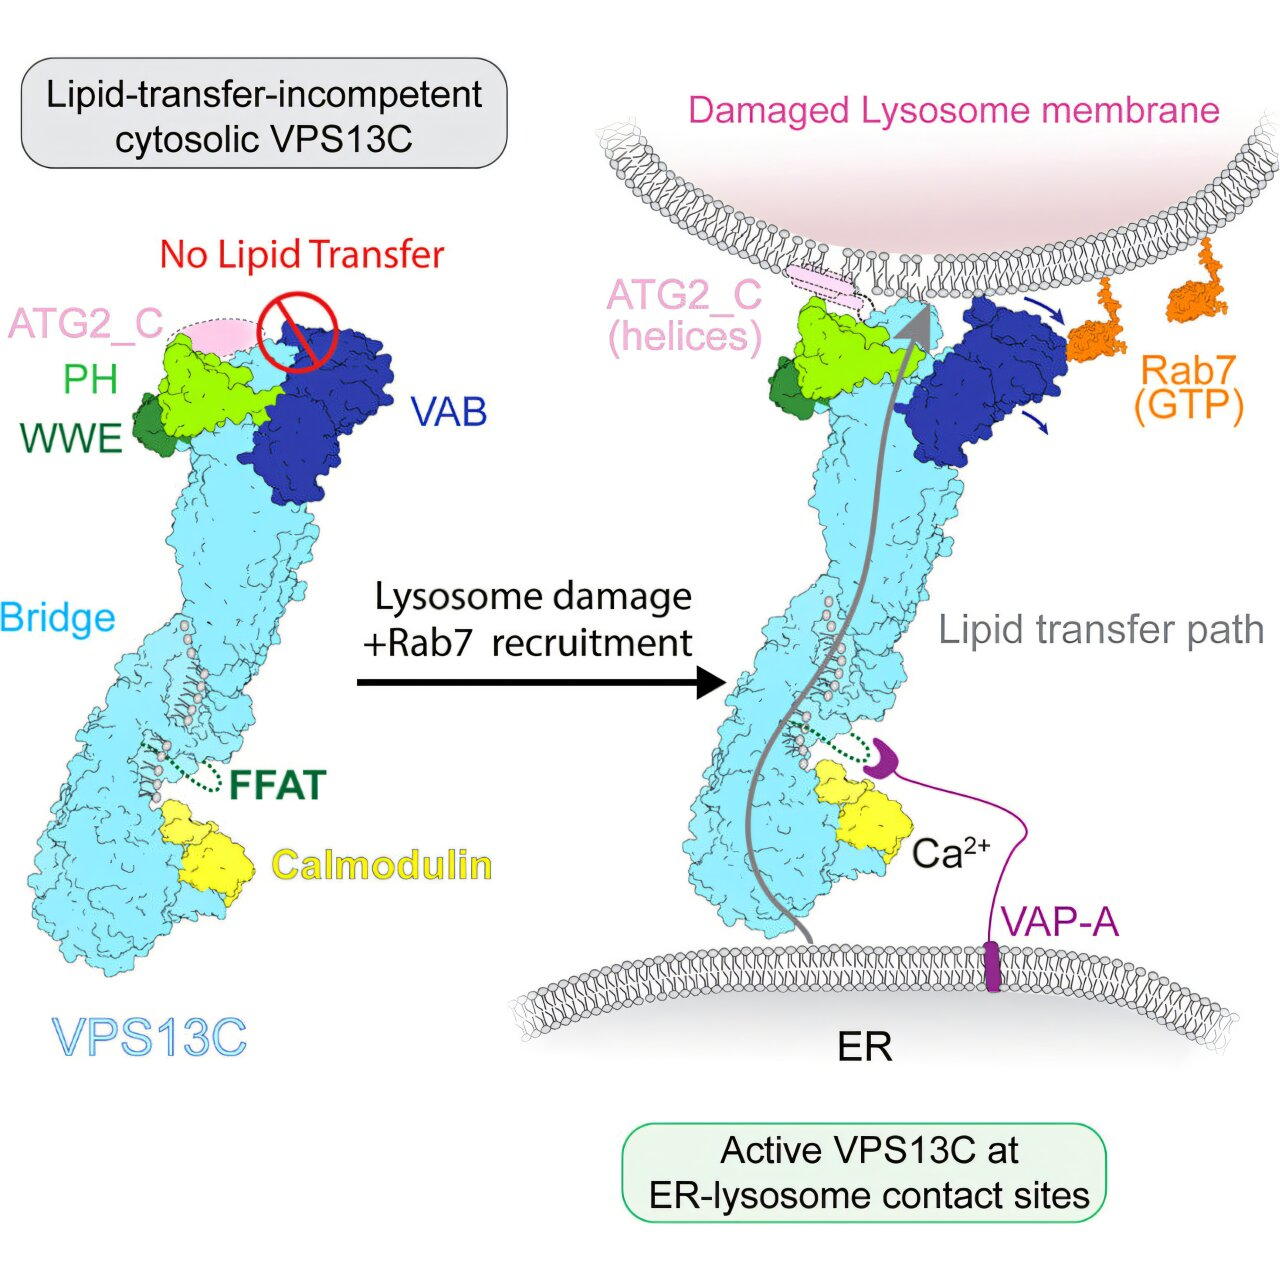
发表在《Molecular Cell》上的第二项研究则利用冷冻电镜解析了 VPS13C 蛋白的结构。VPS13C 的功能障碍与早期发作型帕金森病密切相关。
去年,De Camilli 团队发现,当细胞内负责清扫垃圾的溶酶体(Lysosome)膜受损时,VPS13 蛋白会迅速聚集至内质网与溶酶体的接触位点,通过输送新脂质来“修补”受损的溶酶体膜。
最新的结构分析表明,在未结合溶酶体时,VPS13C 处于“失活”状态——其顶端存在一个皇冠状结构(Crown-shaped structure),该结构封堵了脂质运输通道,阻止其与膜结合。只有发生构象变化、皇冠结构向侧面移开时,通道才被打开,蛋白转入“激活”状态并开始传输脂质。对照《Cell》研究中捕获的活性状态 VPS13A 结构,研究团队证实这种“皇冠结构封堵-解除”的开关机制在 VPS13 蛋白家族中普遍存在。
靶向干预:应对溶酶体渗漏的新路径
理解 VPS13 蛋白的结构及调控机制,对开发针对神经退行性疾病的干预手段具有重要价值。
越来越多的研究表明,溶酶体膜渗漏是引发帕金森病的重要诱因之一。作为细胞的“垃圾处理厂”,溶酶体一旦破裂,其内部的酸性水解酶和毒性物质渗入细胞质,可能诱发神经元死亡。如果能通过药理学手段增强 VPS13C 的修复活性,加速受损溶酶体的膜重构,将有望阻断这一病理演变过程。
De Camilli 教授表示,现有数据表明这类蛋白的传输效率确实存在增强的空间,这为未来寻找新的治疗途径提供了重要方向。
参考文献:
Bodan Hu et al, Mechanism of lipid transfer by bridge-like protein VPS13A and the scramblase XK, Cell (2026). DOI: 10.1016/j.cell.2026.05.027
Dazhi Li et al, Cryo-EM structure of soluble VPS13C suggests its regulation by a conformational switch and by calmodulin, Molecular Cell (2026). DOI: 10.1016/j.molcel.2026.06.028
编辑:王洪
排版:李丽















评论 (0)